


 Adenohypophyse: αδένας = Drüse
| Im Hypothalamus trifft
Information über den inneren (Kreislauf, Atmung, Temperatur,
Hydrierung, Salzgehalt, Hormonspiegel...) und äußeren Zustand des
Organismus (Sinnesinformationen, Tageszeit, Belastung,
Bedrohung, sexuelle Anreize, Ressourcen etc) zusammen. Er antwortet auf diese Reizmuster mit entsprechender Neurosekretion: -- Parvozelluläre Neurone sezernieren in der eminentia mediana Liberine und Inhibine und steuern damit über Zellen des Hypophysenvorderlappens die meisten peripheren Hormonsysteme, -- magnozelluläre Neurone produzieren Vasopressin und Oxytocin (Speicherung im Hypophysenhinterlappen) und beeinflussen u.a. Blutdruck, Wasserhaushalt, Geburts- und Stillvorgang. Die Adenohypophyse wird einerseits vom Hypothalamus beeinflusst, andererseits durch periphere Signale (Hormonkonzentrationen). Der rückwärtige Teil (Zwischenlappen) bildet Melanotropine. Der Hinterlappen (Neurohypophyse) unterliegt der neuronalen Aktivität des hypothalamischen nucl. supraopticus und paraventricularis. Das hypothalamisch-hypophysäre System setzt seine Hormone zum Großteil diskontinuierlich (pulsatil) frei. Die Empfindlichkeit der Zielzellen bleibt dadurch erhalten; konstante Hormonkonzentrationen führen zu receptor downregulation und heben die Hormonwirkung auf (Refrakterität). Die Information an die Peripherie ist auf diese Weise nicht nur chemisch (Molekülstruktur), sondern auch frequenzmoduliert (Zeitprofil). |
 Faktoren der Hormonproduktion Hypophysenvorder-, Zwischen-, Hinterlappen Vorderlappenhormone Hypothalamische Kerne Hypophysenhinterlappen
 Kisspeptine

 Core messages Neuropeptide

 Abbildung: Hypothalamus und Hypophyse

 hat zahlreiche Funktionen:
 Autonome Reaktionen auf Belastung / Stress (Vasokonstriktion, Tachykardie, Blutdruckerhöhung; Hyperglykämie; Proteinabbau; Hypokaliämie; Hypervolämie u.a.) Einstellung des Energiegleichgewichts, Thermoregulation Hunger (metabolisches Gleichgewicht) und Durst (Trinkverhalten, Osmo- und Volumenregulation) Schlaf-Wach-Zyklen Endokrine Steuerfunktion (Hypophyse) Verhalten (einschließlich Sexualverhalten)
Von hypothalamischen Neuronen bzw. endokrinen Zellen in der Hypophyse freigesetzte Hormone Nach Liqun Luo, Principles of Neurobiology, 2nd ed. CRC Press 2021 |
||
| Hormon |
Funktion |
|
| Direkte Freisetzung im Hypophysenhinterlappen |
||
| Oxytocin |
Beeinflusst mütterliches und soziales Verhalten |
|
| Vasopressin |
Reguliert Wasserhaushalt, beeinflusst soziales Verhalten |
|
| Stimulierende Wirkung hypothalamischer Neurone auf endokrine Zellen des Hypophysenvorderlappens |
||
| Hypothalamus |
Hypophysen- vorderlappen |
|
| CRH |
ACTH |
Reguliert Stressreaktionen, Glucocorticoidfreisetzung |
| GnRH |
LH, FSH |
Regt Freisetzung von Geschlechtshormonen, Reifung und sexuelles Verhalten an |
| GHRH |
GH |
Regt Wachstum an |
| TRH |
TSH, Prolactin |
Regt Stoffwechsel und Milchproduktion an |
| Inhibierende Wirkung hypothalamischer Neurone auf endokrine Zellen des Hypophysenvorderlappens | ||
| Hypothalamus | Hypophysen- vorderlappen |
|
| Somatostatin |
GH |
Wachstum |
| Dopamin |
Prolactin |
lactogenese |

 Abbildung: Hypothalamisch- hypophysäres System
 Zu hypothalamischen Kernen s. auch dort , zum nucl. arcuatus s. auch dort Unter Neurohormonen (neurohormones) versteht man in den Blutkreislauf abgegebene Produkte neurosekretorischer
(neuroendokriner) Zellen ( Abbildung) - modifizierter Neuronen, die auf neuronale, u.a.
reflexbedingte Reize hin (gelegentlich nach zwischenzeitlicher
intrazellulärer Speicherung) ihre Signalsubstanz an den
Extrazellulärraum abgeben, hier sowohl parakrin wirken als auch mit der
Blutbahn weitergetragen werden (dadurch werden sie definitionsgemäß zu
"Hormonen").
 Die Neuriten neuroendokriner (neurosekretorischer) Zellen - also von Nervenzellen,
die Neurohormone sezernieren - enden oft in der unmittelbaren Nähe von
Blutkapillaren. So gelangen die Neurohormone zügig in den Kreislauf.
 Hypothalamus (Liberine, Somatostatin, Dopamin, Neurotensin, Vasopressin, Oxytocin), Hypophyse (Tropine, Vasopressin, Oxytocin) sowie von enteroendokrinen Zellen (Gastrin, Sekretin, CCK, GIP, GLP-1, Serotonin, Histamin, Somatostatin, Motilin).
 Der magnozelluläre neuroendokrine
Abschnitt besitzt zwei Neuronenpools: Der eine bildet Vasopressin, der
andere Oxytocin (wie im nucleus supraopticus). Dieses sind die
"Hinterlappenhormone", sie wandern über die Axone (die den tractus hypothalamo-hypophysialis aufbauen) zur Neurohypophyse und werden dort je nach Bedarf in den Kreislauf abgegeben. Der parvozelluläre neuroendokrine Abschnitt produziert
TRH, CRH und Somatostatin (sowie GIH: growth-hormone inhibiting
hormone) - ebenfalls in separaten (spezialisierten) Zellen, deren Axone
in der eminentia mediana enden und ihr Peptid an den
hypothalamisch-hypophysären Pfortaderkreislauf abgeben. Der deszendierende Abschnitt des nucl. paraventrivularis hat wiederum drei Abschnitte (dorsal, lateral, ventral), deren Nervenzellen Axone das zentrale autonome Netzwerk, die Marginalzone (lamina I) des Hinterhorns / Trigeminuskerns, das zentrale Höhlengrau sowie die formatio reticularis kontaktieren. vgl. dort
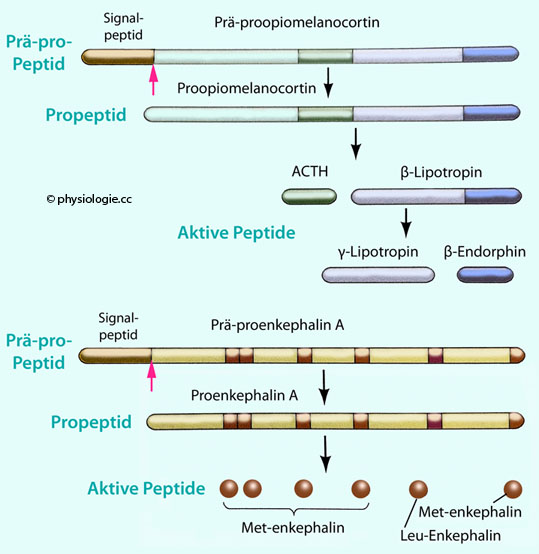 Abbildung: Proteolytische Verarbeitung von Prä-propeptiden
Neuropeptide unterscheiden sich funktionell in mehrfacher Hinsicht von klassischen Neurotransmittern, zum Beispiel in Hinblick auf Entladungscharakteristik: Die präsynaptischen Entladungsfrequenzen liegen höher als die zur Freisetzung von Transmittern (impulse trains). So kann an derselben Synapse durch niedrigfrequente Entladung aus kleinen Vesikeln ein exzitatorischer Transmitter, durch hochfrequente hingegen aus großen Vesikeln ein inhibitorisches
Neuropeptid freigesetzt werden; Synaptische Charakteristika: Die Moleküle sind groß, ihre Konzentration im synaptischen Spalt geringer als bei Neurotransmittern; als komplexe Moleküle übermitteln sie eine höhere Informationsdichte, die Selektivität ist größer; ihre Rezeptoren finden sich postsynaptisch auch außerhalb der Synapse, die Bindungsaffinität ist höher Diffusionsstrecken: Neurotransmitter
diffundieren nach ihrer Freisetzung höchstens ~50 µm weit, bevor sie
einerseits wiederaufgenommen, andererseits abgebaut werden. Neuropeptide
hingegen können über Strecken von mehr als 1000 µm diffundieren; sie haben eine entsprechend längere Verweildauer im
Extrazellulärraum. Der Neurotransmitter wird nicht gleich wiederaufgenommen, sondern bleibt relativ lange bioaktiv.
Abbildung).
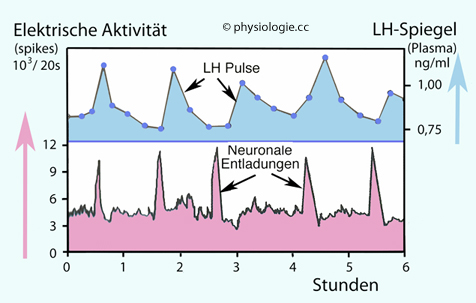 Abbildung: LH-Spiegel im Blut als Funktion elektrischer Entladungsmuster hypothalamischer Zellen
 Exterozeptoren: Fühlen, Temperatur, Schmerz, Sehen, Hören, Riechen, Schmecken Enterozeptoren: Volumen-, Baro-, Chemo-, Osmo-, Glucorezeptoren)Abbildung oben).
 Abbildung: Wirkungskaskade neurosekretorischer Zellen Die Proteingruppe Kisspeptin (Kisspeptin-54:
früher Metastin) wird von Neuronen in Hypothalamus, Mandelkernen und
Hippocampus sowie in der Nebennierenrinde exprimiert. Kisspeptine wirken über metabotrope Kisspeptin- (GPR54-) Rezeptoren (KiSS1-derived peptide receptors). Im Hypothalamus (nucl. periventricularis, praeopticus, arcuatus ) steuert es zusammen mit Neurokinin B und Dynorphinen die Freisetzung von GnRH-"Pulsen" (Abbildung) und hat vermutlich altersabhängige Wirkungen (es beteiligt sich an der
pubertären Umstellung auf den adulten Sekretionsmodus). Kisspeptin
scheint weiters sexuelle Bindungen zu beeinflussen. Auch im
renal-adrenalen System spielen Kisspeptine eine Rolle (Anregung der
Aldosteronsynthese, Salzresorption, Blutdruckanstieg).). Diese bildet vor allem "trope"
(auf etwas gerichtet, gemeint sind periphere
Hormondrüsen) Hormone (Tropine), sie steht unter dem steuernden
Einfluss des Hypothalamus.
 Abbildung):
 Axosomatische synaptische Einflüsse auf hypothalamisch-neurosekretorische Zellen können direkt (z.B. durch Kisspeptin) oder indirekt
erfolgen (z.B. wirken auf somatisch-afferente Neurone ihrerseits
fördernde (z.B. noradrenerge) und hemmende (z.B. GABAerge) Zellen ein Opioiderge hemmende Afferenzen wirken axoaxonal (präsynaptisch) auf hypothalamisch-neurosekretorische Zellen Dopaminerge Neuronen sezernieren ihren Transmitter direkt in Pfortadergefäße der eminentia mediana (Hemmung der Prolactinfreisetzung im Vorderlappen)
 Abbildung:
Magnozelluläre und parvozelluläre Projektionen: Beispiel Oxytocin Magnozelluläre Neurone setzen Vasopressin und Oxytocin frei (Hypophysenhinterlappen, Abbildung) Parvozelluläre Neurone setzen Liberine / Inhibine frei (eminentia mediana) und projizieren auf den nucleus accumbens Postganglionäre sympathische Zellen setzen Adrenalin frei (Nebennierenmark) Pinealozyten setzen (auf adrenerge Impulse hin) Melatonin frei (Epiphyse) Einige hypothalamische Hormone sind multifunktional,
d.h. sie richten sich an mehrere "Adressaten" - beispielsweise fördert
TRH nicht nur die TSH-, sondern auch Prolactinausschüttung; GnRH
stimuliert sowohl die LH- als auch FSH-Produktion; Somatostatin hemmt
nicht nur die GH-, sondern auch die TSH-Sekretion; Dopamin hemmt neben
der Freisetzung von Prolactin auch die von TSH und α-MSH. Hypophysenhormone können als Neuromodulatoren
auf den Hypothalamus rückwirken. Dazu gibt es verschiedene Wege:
Hinterlappenhormone können über retrograden axonalen Transport zum
Hypothalamus gelangen; Vorderlappenhormone können das auf dem Blutweg -
direkt über lokale Pfortaderäste, oder über den systemischen Kreislauf.
Nicht alle hypothalamischen Hormone werden in den Pfortaderkreislauf
sezerniert; sie können auch an anderen Stellen als Neuromodulatorern
wirken und dort Transmitterfreisetzung und Verhalten beeinflussen. So wirkt z.B. im Gehirn freigesetztes GnRH auf das Sexualverhalten. Die Freisetzung hypophysärer Hormone steht auch unter dem Einfluss verschiedener Neurotransmitter und Neuropeptide (z.B. GABA, VIP, Enkephaline, Substanz P). Hypophysenzellen verfügen über entsprechende Rezeptoren. (Vorder- und Zwischenlappen), die durch Auswachsen der endodermalen Rachentasche (Rathke'sche Tasche ) entsteht, und der Neurohypophyse: Der Vorderlappen
(HVL) bildet trope Hormone (von τρεπω
= auf etwas gerichtet sein - nicht "troph", wie in vielen (vor allem
amerikanischen) Büchern fälschlich steht - "troph" steht für τροφή =
Ernährung, z.B. atroph, hypertroph). (ACTH, TSH, FSH, LH, Prolactin), sie steuern die Hormonfreisetzung peripherer Drüsen (Glucocorticoide,
Schilddrüsenhormone, Geschlechtshormone), Ovulation und Spermatogenese,
Wachstum und Brustdrüsenentwicklung.
Melatotropine (MSH) und ACTH stammen vom selben Vorläufermolekül - Pro-opiomelanocortin (POMC) - ab (Abbildung):
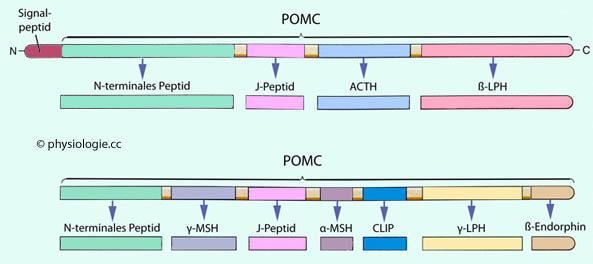 Abbildung: Was aus POMC entsteht N-terminales Peptid ist Vorläufer von γ-MSH. Es kann die Proliferation von Nebennierenrindenzellen fördern und die
Freisetzung anderer Hypophysenhormone beeinflussen. Die physiologische
Rolle von J-Peptiden ist unklar (Adhäsionsproteine?), sie können als Markerproteine für die ACTH-Produktion genutzt werden (Synthese 1:1). ACTH regt die Nebennierenrinde an. ß-LPH (ß-Lipotropin) mobilisiert Fett aus Adipozyten und ist eine Vorstufe für ß-Endorphin. Das Neuropeptid und Hormon γ-MSH (melanozytenstimulierendes
Hormon) beteiligt sich an der Regulation von Nahrungsaufnahme und
Energiehaushalt, es kann auch natriuretisch und blutdrucksenkend
wirken. Das Neuropeptid und Hormon α-MSH wirkt über Melanocortinrezeptoren, es regt
die Melaninproduktion in der Haut an (Schutz vor UV-bedingten Schäden),
wirkt entzündungshemmend, senkt den Appetit und spielt eine Rolle für
Aufmerksamkeit und Lernen. Das Neuropeptid CLIP (corticotropin-like intermediate peptide) besteht aus 22 Aminosäuren des ACTH und wirkt auf Atmung, Schlaf und Schmerzkontrolle. γ-LPH ist ein Fragment des ß-LPH. ß-Endorphin ist im Blut normalerweise nicht nachweisbar, wohl aber nach starker körperlicher Belastung, Stress oder bei Schmerzzuständen
Der Zwischenlappen bildet Melanotropine = Melanozyten-stimulierende Hormone (MSH, Intermedine),
Peptidhormone, welche auf Melanozyten wirken und die Pigmentierung
erhöhen. Man kennt α-MSH (verantwortlich für die Pigmentierung von Haut und Haaren, Wirkung über den Melanocortinrezeptor MC1), β-MSH und γ-MSH (wirken an MC1-, MC3-, MC4- und MC5-Rezeptoren).
Die gemeinsame Sekretion von ACTH uns ß-Endorphin kann vorteilhaft
sein, wenn physischer Stress durch eine Verletzung auftritt -
ß-Endorphin ist ein Opioid und kann zur Schmerzlinderung beitragen.
 Der Hinterlappen
(HHL) entsteht aus dem neuralen Ektoderm. Fasern aus dem nucl.
supraopticus und paraventricularis setzen Vasopressin (=ADH) und Oxytocin
frei (Abbildung). Dazu müssen diese Kerne im Rahmen entsprechender
Regelungsvorgänge angeregt werden, z.B. durch Blutdruckabfall oder
Wassermangel (ADH) oder Saugreiz an der Brustwarze (Oxytocin).
 Abbildung: Hypothalamisch-hypophysäres System Abbildung) und abhängig von biologischen Rhythmen. Die pulsatile Freisetzung
gewährleistet Wirksamkeit: Kontinuierliche Ausschüttung würde durch
Rezeptor-Endozytose (Herunterregulierung) die Zielzellen refraktär
gegenüber dem Hormon machen.
 Bei Hypophyseninsuffizienz (z.B. Sheehan-Syndrom: Defekt des mütterlichen Hypophysenvorderlappens infolge postpartaler Perfusionsminderung) werden trope Hormone diskontinuierlich infundiert (was ja die Hypophyse physiologischerweise tut), da sie sonst ihre Wirksamkeit verlieren (Rezeptor-downregulation).
 Abbildung: Signalstoffe zur Interaktion zwischen endokrinem, Immun- und NervensystemAbbildung). Daraus ergibt sich ein
komplexes Feedback-System zwischen hormoneller und immunologischer
Kontrolle. ACTH und α-MSH sind Abkömmlinge des POMC. Zu den somatotropen Hormonen zählt man GH und Prolactin (und plazentares Lactogen) - sie wirken über Mitglieder der Zytokinrezeptor-Familie. TSH, LH, FSH und hCG sind glykosylierte Proteine.
 Abbildung: Hypothalamus und Hypophyse (Vorder- und Hinterlappen)
 ACTH TSH Prolactin Gonadotropine
 Abbildung: Pulsatile Freisetzung des Wachstumshormons vgl. dort
| Somatotropin wird vorwiergend bei intensiver körperlicher Aktivität sowie in der ersten Nachthälfte freigesetzt |
 Abbildung: Steuerung und Wirkung von Wachstumshormon Abbildung): GHRH fördert, Somatostatin hemmt die
Freisetzung von GH aus dem Hypophysenvorderlappen. Zusätzlich hemmen
sowohl Somatostatin als auch GH die GHRH-Sekretion, und zahlreiche
weitere Faktoren (Metabolite, Neurotransmitter, Medikamente)
beeinflussen diesen komplexen Steuerungsmechanismus.Abbildung).
 Abbildung: TRH steuert die Schilddrüsenfunktion sind ependymale Gliazellen am Boden der eminentia mediana. Sie beeinflussen u.a. die Dejodierung von T4 zu T3 und TRH-Freisetzung.
Sie regeln auch die Freisetzung von tropen Hormonen in den
hypothalamisch-hypophysären Pfortaderkreislauf, indem sie sich von dem Raum zwischen hypothalamischen
Neuritenendigungen und Kapillaren zurückziehen (dieser Vorgang ist in
Kooperation mit Astrozyten über mehrere Faktoren reguliert).
 POMC, Pro-opiomelanocortin CART, Cocaine and amphetamine related transcript Über Regulation und Wirkungen des Prolactins s. dort
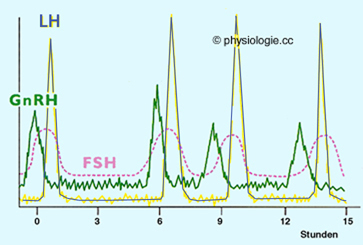 Abbildung: Pulsatile Ausschüttung von GnRH, LH, FSH Abbildung).
Diese pulsatile Freisetzung korreliert mit einer hormonellen
"Frequenzcodierung" des Systems Gehirn - Geschlechtsdrüsen: Fällt der
Hypophysenvorderlappen aus (Sheehan-Syndrom infolge ischämischer
Nekrose), hat diskontinuierliche Hormonsubstitution mit einer ähnlichen
Sequenz wie physiologische Hormonpeaks den stärksten therapeutischen
Effekt. GnRH, FSH und LH sind die hypothalamisch-hypophysären Schlüsselhormone der Fortpflanzung. Näheres über Gonadotropine s. dort
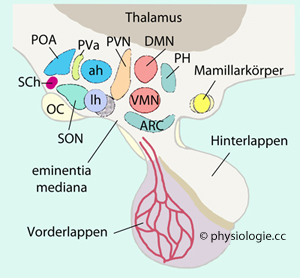 Abbildung: Kerne des Hypothalamus, Funktionen, Hormonbildungsorte (vgl. dort)
Funktionen hypothalamischer Kerne (vgl. >Abbildung oben) Modifiziert nach Wilkinson / Brown, An Introduction to Neuroendocrinology, 2nd ed, Cambridge University Press 2015 |
|
| Präoptisches Areal (POA) und vorderer Hypothalamus (ah) |
Temperaturregulation Sexualverhalten, mütterliches Verhalten |
| Nucl. suprachiasmaticus (SCh) |
Steuerung von Glucocorticoiden, Melatonin, u.a. Schlaf-Wach- und andere zirkadiane Rhythmen |
| Periventrikulärer Kern (PVa) |
Somatostatin-Synthese |
| Nucl. supraopticus (SON) |
Synthese von Vasopressin, Oxytocin und Neurotensinen (magnozelluläre Neuronen); Flüssigkeitsbalance, Stillen |
| Nucl. paraventricularis (PVN) |
Synthese von Vasopressin, Oxytocin (magnozelluläre Neuronen), CRH, TRH (parvozelluläre Neuronen); Sympathische Kontrolle von Herz, Blutdruck |
| Lateraler Hypothalamus (lh) |
Bildung von Orexin; Schlaf-Wach-Zyklus, Energiebalance, Nahrungsaufnahme (orexigene / anorexigene Faktoren) |
| Nucl. dorsomedialis (DMN) |
Regulation zirkadianer Rhythmen; Ess- und Trinkverhalten; Kreislaufantwort auf Stress; Aggressionskontrolle |
| Nucl. ventromedialis (VMN) |
Kontrolle des Verdauungssystems via Cholecystokinin; Glucorezeptor, Energie- und Nahrungsaufnahme-bilanz; Sexualverhalten; Kreislauffunktionen |
| Posteriorer Hypothalamus (PH) |
Temperaturregulation Kontrolle des Sympathikus / viszeraler Funktionen Schlaf, Weckreaktionen, Angst |
| Nucleus arcuatus (ARC) und eminentia mediana |
Synthese von GnRH und GHRH, Dopamin, ß-Endorphin, α-MSH: Kontrolle des Körpergewichts (NPY-Neurone) Kisspeptine → Reproduktionssystem |
In der (frühen) Follikelphase hemmen sie das System (negative Rückkopplung).
Steigt die Östrogenkonzentration gegen Ende der Follikelphase für
mehrere Stunden über einen Schwellenwert (150-200 pg/ml), dann kippt
der Effekt in Richtung einer positiven Rückkopplung, die basophilen
Zellen in der Hypophyse werden gegenüber GnRH sensibilisiert (Östradiol
erhöht die Zahl der GnRH-Rezeptoren im Vorderlappen) und es kommt zum
präovulatorischen LH- und FSH-Gipfel (LH-surge). Oxytocin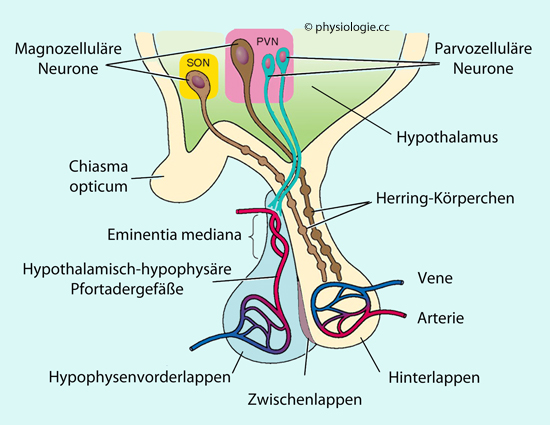 Abbildung: Vasopressinneurone und hypothalamisch- hypophysäres System. Sie enden
im Hypophysenhinterlappen, wo Vasopressin über das Blut aus der a.
hypophysealis inferior in den Kreislauf abtransportiert wird
("hypothalamisch- neurohypophysäres System").Abbildung). Die beiden Hormone sind ähnlich aufgebaut:
| Oxytocin und Vasopressin haben bis auf zwei Aminosäuren die selbe Zusammensetzung |
| Oxytocin und Vasopressin werden aus dem Hypophysenhinterlappen freigesetzt |
) gespeichert. Sie wird stimuliert durch Glutamat, Acetylcholin, Dopamin, Noradrenalin
(insbesondere Oxytocinausschüttung unter der Geburt), ATP, CCK
Sie wird gehemmt durch GABA, Glyzin, Dopamin, Somatostatin,
Endocannabinoide (insbesondere Oxytocinausschüttung unter der Geburt) Rezeptoren
 Vasopressin hält in der Niere - über V2-Rezeptoren - bereits bei niedrigen Blutspiegeln Wasser zurück ("Wassersparhormon"). Bei höheren Konzentrationen kann es - über V1-Rezeptoren - stark vasokonstriktorisch wirken und insbesondere bei Gefahr einer arteriellen Hypotonie den Blutdruck stabilisieren.
 Abbildung: Vom Vasopressin-Präprohormon zu Vasopressin in Vollausprägung: stündlich ~1 Liter).
| Vasopressinmangel bedingt Diabetes insipidus (Harnproduktion bis ~1 l/h) |
 Vasopressin wird in Form des Prähormons im Hypothalamus gebildet ( Abbildung oben) und
durch axonalen Transport in den
Hypophysenhinterlappen befördert. Dabei wird das Prähormon durch
Enzyme, die sich in den Transportvesikeln befinden, zu Vasopressin und
Begleitpeptiden gespalten, u.a. Neurophysin II, das als Transportprotein dient.
 Abbildung: Osmoregulatorischer Vasopressin-Regelkreis Auslösende Reize: Vasopressin wird bei
Anstieg der osmotischen Konzentration der Körperflüssigkeiten (Rezeptoren im Bereich des nucl. supraopticus des Hypothalamus) oder
Volumenmangel bzw. Blutdruckabfall (Rezeptoren im Kreislauf: Pulmonalvenen, linker Vorhof, Karotissinus, Aortenbogen) freigesetzt und verringert über V2-Rezeptoren (s. unten) die Wasserausscheidung in der
Niere (daher “antidiuretisches Hormon”). Die
Vasopressinausschüttung wird durch Signale von kardiovaskulären
Barorezeptoren gehemmt (tonische Inhibition). Blutdruckabfall fördert
daher die Vasopressinsekretion (Disinhibition), und umgekehrt. In höherer
Konzentration wirkt Vasopressin über V1-Rezeptoren vasokonstriktorisch und blutdrucksteigernd (daher
“Vaso-pressin”). Volumenmangel dominiert den Gesamteffekt, sodass u.a. auch bei hypotoner Dehydratation Vasopressin vermehrt ausgeschüttet wird (obwohl die Osmolalität erniedrigt ist). Vasopressin wird bei Belastungssituationen (Stress, Trauma, Schmerz, intensive olfaktorische, visuelle, auditive Reize)
in die Blutbahn freigesetzt - es wirkt volumensparend (Kreislauf!) und in
höherer Konzentration gefäßverengend (Blutdruck!). Vasopressin ist Teil einer
"Alarmachse", zusammen mit "klassischen Stresshormonen" (Adrenalin, Cortisol). Bei intensiver orthostatischer Belastung und insbesondere präsynkopal (bei drohendem orthostatischem Kollaps)
sowie bei Auftreten von Übelkeit oder Schmerz steigen Ausschüttung
und Plasmaspiegel des Vasopressins besonders stark und rasch an - bis weit über das
Zehnfache des Kontrollwertes. Aufgrund der geringen Halbwertszeit
(~2-5 Minuten, Abbau vor allem in Leber und Niere) nimmt der
AVP-Plasmaspiegel nach einem solchen Ereignis auch rasch wieder ab. Auch Angiotensin II stimuliert die Freisetzung von Vasopressin.
| Die
Vasopressinsekretion wird u.a. durch Volumenmangel (Dehnungsrezeptoren)
oder ansteigende Serumosmolarität (Osmorezeptoren) angeregt |
Gehemmt wird die Vasopressinfreisetzung durch GABA, Cortisol und Atriopeptin. Opiate, Barbiturate, Alkohol
gehören zu Stoffen, welche die Sekretion von Vasopressin unterdrücken.
Daher kann z.B. die Einnahme alkoholischer Getränke zu Dehydrierung
führen ("Alkoholkater", von καταρρεῖν = herabfließen).
 Abbildung: Steuerung der Vasopressinsekretion Abbildung), was die Niere zu
verstärkter Rückresorption von Wasser veranlasst. Das wirkt auch dem
Effekt allfälligen Alkoholkonsums entgegen (Alhohol wirkt dehydrierend). V1-Rezeptoren
finden sich in hoher Dichte auf der glatten Gefäßmuskulatur, auch am
Herzmuskel. Weiters werden sie exprimiert von Zellen in Gehirn, Hoden,
Leber und Nieren, sowie auf Thrombozyten, wo Vasopressin
prothrombotisch wirkt. V2-Rezeptoren sind G-Protein-gekoppelte Rezeptoren - sie wirken über cAMP. Sie finden sich in den Sammelrohren der Niere, wo sie die Einlagerung von Aquaporin-2 in die apikale Membran der Tubulus-Hauptzellen ("Wasserspareffekt") sowie des Harnstofftransporters
fördern. Diese Wirkungen treten schon bei
wesentlich niedrigerem Vasopressinspiegel (ab ~0,05 pM) auf als sie für die Aktivierung von V1-Rezeptoren erforderlich sind.
| V1-Rezeptoren wirken vasokonstriktorisch, V2-Rezeptoren antidiuretisch |
Auch V3-Rezeptoren (früher: V1B-Rezeptoren) sind
G-Protein-gekoppelte Rezeptoren - sie unterscheiden sich in ihrem
pharmakologischen Ansprechmuster und wurden auf Zellen in Gehirn und
Hypophysenvorderlappen (ACTH) nachgewiesen. Abbildung: Wirkungsmechanismus von Vasopressin über V2-Rezeptoren Blutdruckabfall / Volumenmangel regt die Vasopressinausschüttung an.
| Arterielle Hypertonie kann über Vasopressinabfall das Harnvolumen steigern |
| Absinken des Zentralvenendrucks steigert die Vasopressinfreisetzung |
 Abbildung: Vasopressinrezeptoren und ihre Kreislaufwirkungen Aktivierung
und Translokation von Na/K/Cl-Symportern an / zu der apikalen
(luminalen) Membran der Tubulusepithelzellen (rascher Effekt), sowie deren Expression (länger anhaltender Effekt).
| Vasopressineffekte ergänzen sich gegenseitig: Anstieg der Durchblutung im inneren Nierenmark (über V1-Rezeptoren), erhöhte Resorption von Salz und Harnstoffresorption. Die hohe Osmolarität treibt die Resorption von Wasser an, ermöglicht durch die apikale Membraneinlagerung sowie gesteigerte Expression von Aquaporinkanälen in Sammelrohrzellen (beides wird über V2-Rezeptoren stimuliert) |
 Vasopressin (ADH, Adiuretin) s. dort
 Vor allem hepatische und renale Peptidasen bauen das Hormon rasch ab (biologische Halbwertszeit im Kreislauf 10-35 Minuten). Oxytocin wird im Hypothalamus gebildet und durch axonalen Transport in den
Hypophysenhinterlappen befördert. Dabei ist es an ein Transportprotein
- Neurophysin I - gebunden; in den Vesikeln wird es dann vom Transporter enzymatisch entkoppelt.
| Oxytocin wird im Hypothalamus gebildet |
)
Oxytocinfreisetzung aus, was die Wehentätigkeit unterstützt. Auch der
Koitus führt zu Oxytocinausschüttung, ferner Reize, welche eine
Vasopressinsekretion fördern. Östradiol stimuliert die Oxytocinfreisetzung, Relaxine hemmen sie. Abbildung: Oxytocinrezeptor
| Oxytocin regt die Wehentätigkeit an Stillen (Oxytocinwirkung) begünstigt die postpartale Rückbildung des Uterus |
 Erhöhte Oxytocinproduktion senkt die Freisetzung von GnRH aus dem
Hypothalamus und kann so - in der Stillperiode - den menstruellen
Zyklus unterbrechen. Eine verlässliche empfängnisverhütende Wirkung ist
dadurch nicht gegeben; insbesondere bei längerem Stillen kehren die
Zyklen wieder zurück.
Abbau und Ausscheidung erfolgen, ähnlich wie bei Vasopressin, über
Leber und Nieren. Zusätzlich bilden Plazenta und vermutlich Uterus eine Peptidase
(Oxytocinase), die bei Schwangeren Oxytoin inaktiviert. Die
biologische Halbwertszeit des Oxytocins beträgt 3-6 Minuten. Oxytocin s. dort
 .
Reduktion der Trainingsintensität bzw. Normalisierung des
Körpergewichts stellt die pulsatile GnRH-Freisetzung üblicherweise wieder her;
die Zyklusstörungen verschwinden. Eingriff in die Regelkreise: Die Verabreichung von GnRH-Analoga
als Depotpräparat führt kurzfristig über Anregung der
gonadotropinproduzierenden Zellen im Hypophysenvorderlappen zu einer
Erhöhung ("flare up-Effekt"), danach aber infolge der auftretenden
Refrakterität (Downregulation der Rezeptoren) zu verminderter
FSH- und LH-Ausschüttung. Die Östrogensynthese im Ovar wird so
supprimiert, was man sich z.B. für die Therapie eines Mamma-Ca zunutze
machen kann. Vasopressin-Rezeptoragonisten können zur Behandlung eines diabetes insipidus eingesetzt werden, soferne der V2-Rezeptor wirksam ist (Unterstützung der Wasserdiffusion ins Nierenmark).
Hochdosiert verwendet man Vasopressinagonisten auch zur Behandlung von
Blutungen im Ösophagus (Varizen: Anregung von vasokonstriktorisch
wirksamen V1-Rezeptoren).

 Neurosekretorische Zellen befinden sich vor allem im Hypothalamus und
setzen im Rahmen regulatorischer Vorgänge Neurohormone frei (GnRH, CRH,
TRH, GH, Vasopressin, Oxytocin) - in das Blut (endokrin) oder in
umliegendes Gewebe bzw. den liquor cerebrospinalis (parakrin). Die
Aktionspotentialfrequenz entscheidet über die Art der exozytierten
Speichervesikel und damit über die Art des freigesetzten Stoffes.
Neurotransmitter diffundieren höchstens ~50 µm bis zu ihrer
Inaktivierung; Neuropeptide kommen mehr als 1000 µm weit und haben
längere Verweildauer im Extrazellulärraum. Neurosekretorische Zellen
erhalten multiple sensorische, zirkadiane und limbische Eingänge und
stehen unter dem Einfluss von Glutamat, GABA, Kisspeptin, Opioiden,
Dopamin, Noradrenalin, Serotonin
Neurosekretorische Aktivität findet sich im Körper an mehreren Stellen:
Magnozelluläre Neurone setzen Vasopressin und Oxytocin frei
(Hypophysenhinterlappen); parvozelluläre Liberine /
Inhibine (eminentia mediana); postganglionäre sympathische Zellen
Adrenalin (Nebennierenmark); Pinealozyten Melatonin (Epiphyse). Die
Freisetzung der Neurohormone erfolgt pulsatil und abhängig von
Tageszeit, Stoffwechselzustand, Stress u.a. Der Hypophysenvorderlappen bildet trope Hormone - somatotrop (GH) und
glandotrop (ACTH, TSH, FSH, LH, Prolactin) -, diese steuern Wachstum
und Entwicklung des Körpers und die Freisetzung von Glucocorticoiden,
Schilddrüsenhormonen, Geschlechtshormonen. Die Hormonfreisetzung steht unter Einwirkung
hypothalamischer Faktoren (Liberine, Statine); sowohl
Hypothalamus als auch Hypophyse unterliegen (meist negativ) rückkoppelnden Wirkungen
peripherer Hormone. Der Zwischenlappen bildet
Melanotropine. Der Hinterlappen speichert Hormone, die durch
neurohumorale Reflexe freigesetzt werden (Vasopressin: Blutdruckabfall
oder Wassermangel, Oxytocin: Dehnung des Geburtskanals, Saugreiz an der
Brustwarze) Sowohl zwischen Immun- und endokrinem System (ACTH, β-Endorphine;
Interleukine, Interferone, TNF-α) als auch zwischen endokrinem und
Zentralnervensystem gibt es wechselseitige Beeinflussung (CRH, ACTH,
β-Endorphine). Immunzellen haben Rezeptoren für GH, ACTH, Prolactin;
Zytokine beeinflussen die Sekretion von Vorderlappenhormonen
Der Hypothalamus wird von übergeordneten Zentren (Kortex, limbisches
System, Thalamus) und der Peripherie beeinflusst (Hormonrezeptoren,
Osmorezeptoren, thermosensitive Zellen, metabolische Rezeptoren).
Efferenzen aus dem Hypothalamus sind hormoneller und neuronaler Natur.
Kleinzellige Neurone des medialen Hypothalamus bilden Liberine und
Statine, großzellige (nucl. supraopticus und paraventricularis) bilden
Vasopressin und Oxytocin (Unterschied: 2 Aminosäuren), die im
Hinterlappen zwischengespeichert werden können. Auf dem Weg dorthin
fungieren Neurophysin I als Transporter des Oxytocins, Neurophysin II
des Vasopressins
Vasopressin (AVP - Arginin-Vasopressin, ADH - antidiuretisches Hormon,
Adiuretin) wirkt als "Wassersparhormon" (Rückresorption von ~20 l/d,
sonst Diabetes insipidus) über die Expression des
Na/K/2Cl--Kotransporters im dicken aufsteigenden Schenkel der
Henle-Schleife sowie die Einlagerung von Aquaporinen in spätdistale
Nierentubuli. Vasopressin ist ein zentraler Player für die Regulation
von Osmolarität, Volumen- und Kreislauffunktion und wirkt direkt
vasokonstriktorisch (blutdrucksteigernd). Es wird in verschiedenen
Belastungssituationen, bei Schmerz, Blutdruckabfall, Volumenmangel oder
erhöhter Serumosmolarität freigesetzt. Es gibt verschiedene
Vasopressinrezeptoren: V2 (antidiuretisch, erhöhte
Harnstoffpermeabilität)
sprechen schon bei niedrigeren Konzentrationen an als V1
(vasokonstriktorisch). Die Vasopressineffekte ergänzen einander
gegenseitig Oxytocin hat wehen- (Ferguson-Reflex) und lactationsfördernde Wirkung
und ist auch als "Kuschelhormon" bekannt. Östrogene steigern
(Expression von Oxytocinrezeptoren), Progesteron senkt die
Oxytocin-Empfindlichkeit des Myometriums. In der zweiten Hälfte der
Schwangerschaft nimmt die Zahl der Oxytocinrezeptoren an den
Myometriumzellen 30-fach zu, die Sensitivität für Oxytocin 8-fach. Stillen begünstigt die postpartale Rückbildung des Uterus
(Stillreflex). Limbisches System und Hirnstamm sind reich an
Oxytocinrezeptoren (Empathie, Vertrauen,
Kontaktfreudigkeit, Angstreduktion, sexuelles Interesse,
elterliches Verhalten) |
 Die Informationen in dieser Website basieren auf verschiedenen Quellen:
Lehrbüchern, Reviews, Originalarbeiten u.a. Sie
sollen zur Auseinandersetzung mit physiologischen Fragen, Problemen und
Erkenntnissen anregen. Soferne Referenzbereiche angegeben sind, dienen diese zur Orientierung; die Grenzen sind aus biologischen, messmethodischen und statistischen Gründen nicht absolut. Wissenschaft fragt, vermutet und interpretiert; sie ist offen, dynamisch und evolutiv. Sie strebt nach Erkenntnis, erhebt aber nicht den Anspruch, im Besitz der "Wahrheit" zu sein.


